

-
首页
-
科研服务
- 基因组
- T2T基因组
- 动植物基因组
- 泛基因组
- 真菌基因组
- 细菌完成图
- 线粒体基因组
- 重测序
- 动植物全基因组重测序
- 性状关联分析
- 转录组
- 二代有参转录组
- 二代无参转录组
- 纳米孔全长转录组
- PB 2+3全长转录组
- 表观组
- Hi-C三维基因组
- 全基因组甲基化
- ATAC-seq
- CUT&Tag
-
分子育种
- 种质资源考察
- 种质资源考察与分类
- 核心种质资源鉴定
- 种质资源指纹图谱
- 种质资源鉴定
- KASP遗传标记
- 亲缘关系鉴定
- 种质资源信息库和性状解析
- 种质资源遗传库
- 性状关联分析
- 种质资源创新创制与推广
- 遗传转化与基因编辑检测
- 液相芯片
- 基因组选择育种
- 种质资源应用推广
-
建库测序
- 短读长建库
- DNA文库
- RNA文库
- 表观组文库
- 送样建议
- 短读长测序
- Novaseq(X Plus,6000)
- DNBSEQ(T7,T7+)
- FAQ-短读长建库测序
- 长读长建库测序
- DNA建库测序
- RNA建库测序
- 表观组建库测序
- 送样建议
- FAQ-长读长建库测序
-
资源中心
- OMSearch
- 技术分享
- 送样建议
- 引物设计
-
关于万摩
- 公司简介
- 新闻资讯
- 项目成果
- 加入万摩
-
首页
-
科研服务
- 基因组
- T2T基因组
- 动植物基因组
- 泛基因组
- 真菌基因组
- 细菌完成图
- 线粒体基因组
- 重测序
- 动植物全基因组重测序
- 性状关联分析
- 转录组
- 二代有参转录组
- 二代无参转录组
- 纳米孔全长转录组
- PB 2+3全长转录组
- 表观组
- Hi-C三维基因组
- 全基因组甲基化
- ATAC-seq
- CUT&Tag
-
分子育种
- 种质资源考察
- 种质资源考察与分类
- 核心种质资源鉴定
- 种质资源指纹图谱
- 种质资源鉴定
- KASP遗传标记
- 亲缘关系鉴定
- 种质资源信息库和性状解析
- 种质资源遗传库
- 性状关联分析
- 种质资源创新创制与推广
- 遗传转化与基因编辑检测
- 液相芯片
- 基因组选择育种
- 种质资源应用推广
-
建库测序
- 短读长建库
- DNA文库
- RNA文库
- 表观组文库
- 送样建议
- 短读长测序
- Novaseq(X Plus,6000)
- DNBSEQ(T7,T7+)
- FAQ-短读长建库测序
- 长读长建库测序
- DNA建库测序
- RNA建库测序
- 表观组建库测序
- 送样建议
- FAQ-长读长建库测序
-
资源中心
- OMSearch
- 技术分享
- 送样建议
- 引物设计
-
关于万摩
- 公司简介
- 新闻资讯
- 项目成果
- 加入万摩
Nature项目文章丨鱼类演化生物学研究领域重大突破


2026年4月22日,西南大学徐洛浩教授、刘海平教授与Axel Meyer教授联合团队在Nature上发表了题为Chromosomal fusions trigger rediploidization of autopolyploid genomes的文章,文章解析了拉萨裸裂尻鱼Schizopygopsis younghusbandi 和弧唇裂腹鱼Schizothorax curvilabiatus的单倍型基因组,首次证实非平衡染色体融合是同源多倍体基因组开启再二倍化进程的关键驱动因素,解析了脊椎动物全基因组复制后,二倍体基因组重建的早期演化路径,填补了同源多倍体演化研究中的研究空白。万摩科技承担了本项目部分相关工作。
文章链接:https://www.nature.com/articles/s41586-026-10439-1
Part.1
研究背景
脊椎动物演化中多次发生全基因组复制(WGD),复制后的基因组会从多倍体恢复为二倍体遗传方式,即再二倍化,这是真核生物复杂性演化的重要来源。但多数多倍化事件发生于数亿年前,基因组重塑复杂,再二倍化早期分子机制长期未被解析。
青藏高原特有鱼类裂腹鱼(裂腹鱼亚科,鲤科)是理想研究模型:该类群约 3000万年前发生同源多倍化,倍性覆盖4n-20n,兼具形态多样性与高海拔适应性,且基因组起源存在争议、缺乏单倍型解析的染色体水平基因组,制约了WGD 与再二倍化机制研究。
Part.2
研究材料与核心方法
研究团队从中国新疆、甘肃和西藏自治区采集了裂腹鱼11个属代表性物种的野生标本(Schizothorax wangchiachii,Aspiorhynchus laticeps,Gymnodiptychus pachycheilus,Ptychobarbus dipogon,Schizopygopsis younghusbandi,Chuanchia labiosa,Platypharodon extremus和Herzensteinia microcephalus)。以拉萨裸裂尻鱼为核心材料构建亲-子代家系,采用PacBio HiFi、ONT 超长读长、Hi-C多技术联合测序,创新trio-binning单倍型组装策略完成单倍型基因组组装;同时解析弧唇裂腹鱼单倍型基因组,通过比较基因组学、细胞遗传学、群体重测序等方法开展研究。
Part.3
研究结果
(1)基因组测序证实多倍化
研究采用1.7 Tb的短读长数据对11个物种进行k-mer频率分布分析,多数物种在 1、2、4 倍测序深度有明显峰值,Platypharodon dipogon、Schizothorax wangchiachii分别在 20、6 倍深度出现峰值,证实前者为二十倍体、后者为六倍体。多数物种2倍 K-mer 峰值缺失,此结果证实了裂腹鱼同源四倍体普遍存在。
研究开发了基因组组装新方法对拉萨裸裂尻鱼进行基因组组装,最终组装结果含90条染色体,与核型结果一致。约55%基因序列为重复序列,注释到100,212个基因。
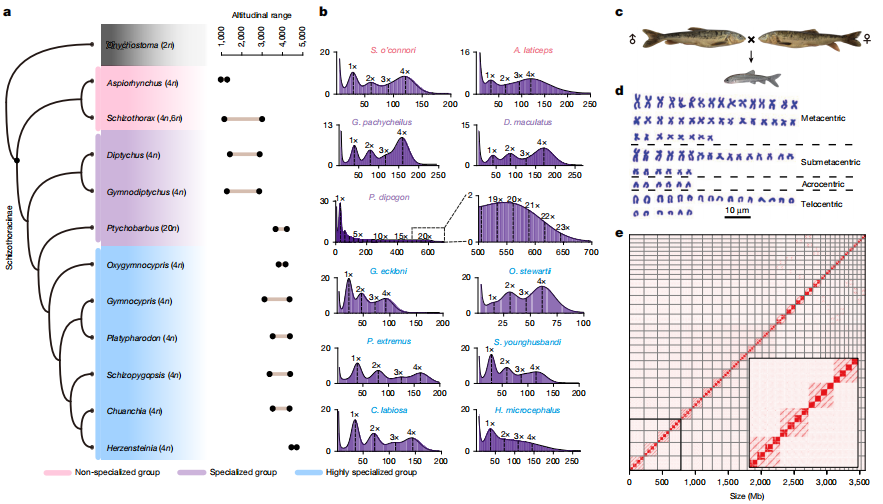
图1 裂腹鱼亚科鱼类均为同源多倍体
(a)基于线粒体基因组构建的11个裂腹鱼亚科系统发育树;(b)11个物种的k-mer频率分布;(c)拉萨裸裂尻鱼亲-子代家系图谱;(d)拉萨裸裂尻鱼核型;(e)拉萨裸裂尻鱼的Hi-C互作热图。
(2)单倍型间不平衡染色体融合
裂腹鱼单倍体染色体数本应为n = 25,但拉萨裸裂尻鱼组装及细胞遗传学观察染色体数为90条,非预期100条(4N=25×4),推测多倍化后可能发生染色体融合或丢失。通过与外群Onychostoma macrolepis基因组进行共线性分析,发现五对染色体融合,支持染色体减少是融合所致。但五次融合仅涉及四条同源染色体其中的两条,另外两条未融合。通过FISH实验验证了不平衡染色体的融合。
这一结构改变会引发关键遗传效应:融合染色体与未融合染色体之间形成重组抑制,并逐步建立偏好配对(preferential pairing)模式。研究团队借助单倍型间Ks值计算与系统发育拓扑结构分析,证实相关染色体完成了从四体遗传到二体遗传的转换;群体基因组分析显示,融合染色体上AAaa 基因型占比显著提高,基于48 个个体的重测序数据分析,印证偏好配对在自然群体中可稳定遗传。
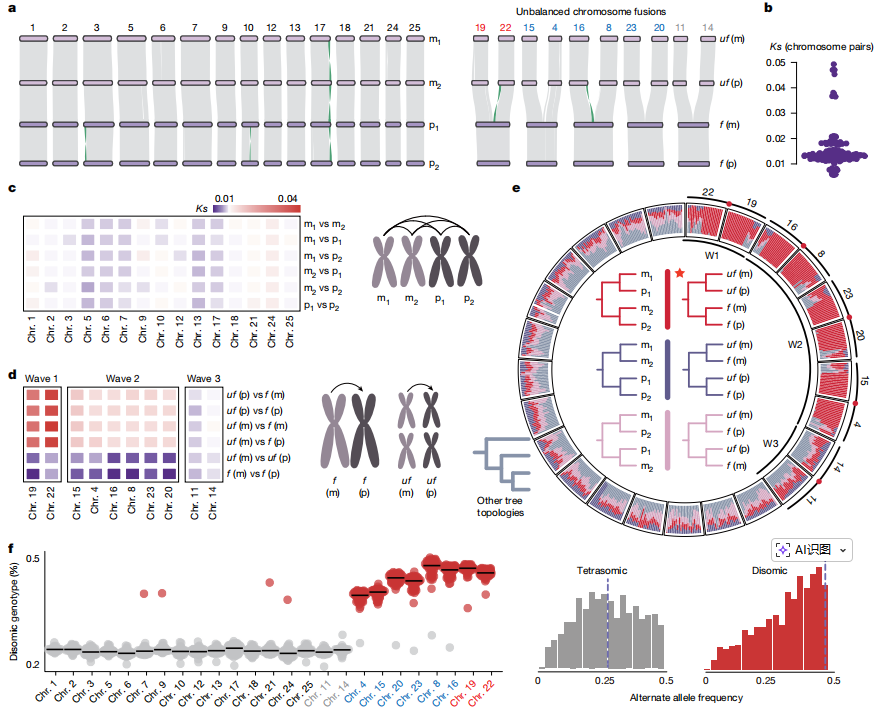
图2 拉萨裸裂尻鱼基因组中的三次再二倍化事件
拉萨裸裂尻鱼四个单倍型的染色体水平共线性分析;(b)同源及部分同源染色体对的平均同义替换率(Ks);(c–d)展示染色体对间平均 Ks 值的热图;(e)四条单倍型在全基因组范围内的系统发育拓扑结构分布;(f)基于重测序数据的二体基因型比值与等位基因频率分布。
(3)染色体融合位点是再二倍化的起始区域
在融合染色体上,二体基因型主要分布于融合位点附近,而染色体臂则多保持四体基因型。系统发育组学分析也印证了这一分布模式。以5 Mb滑动窗口估算融合与未融合染色体的分化水平,发现染色体中心区域分化程度最高,提示其更早开始分化;融合位点附近的蛋白序列分化也更显著。
理论上,融合位点的分化时间可代表再二倍化的起始时间。但该过程漫长且异步,说明WGD事件后曾存在一段时长未知的四体遗传过渡期。因此,基因组内首次发生再二倍化的时间(T2)可作为WGD时间(T1)的下限,其上限则由二倍体祖先分化时间(T0,约3000万年前)限定。基于分子钟估算,chr22与chr19融合事件对应的主峰分化时间约为3000万年前,第二轮再二倍化则始于1000–2000万年前。所有端粒区域均维持四体遗传,表明该区域同源重组仍在持续。
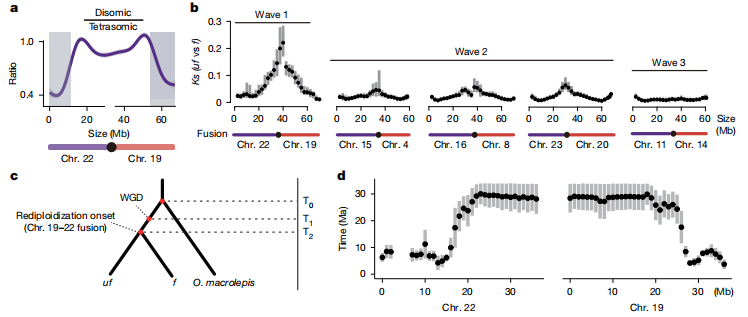
图3 再二倍化起始于染色体融合位点
(a)二体基因型与四体基因型的比例分布;(b)Ks 值在融合染色体上的分布(未融合区段 vs 融合区段);(c)拉萨裸裂尻鱼的演化时间轴;(d)对 chr22 和 chr19 的分化时间估算。
(4)再二倍化过程中的染色体配对行为
为在细胞遗传层面深入解析裂腹鱼再二倍化的基因组重构过程,对拉萨裸裂尻鱼减数分裂中期Ⅰ染色体进行分析,发现同源多倍体典型的环状与链状构型。基于前期研究提出的“环状配对多由中着丝粒染色体形成,链状配对多由端着丝粒染色体形成”假设,注释其着丝粒序列,发现端着丝粒染色体主要用263bp重复单元(Cen263),其余染色体主要用254bp单元(Cen254)。通过着丝粒与端粒探针荧光原位杂交实验证实,环状构型为四价体配对,环状与链状二价体差异在于着丝粒位置,长链构型可能由融合染色体与1-2对未融合染色体配对形成。

图4 减数分裂中期 Ⅰ 的染色体行为
(a)精巢减数分裂中期 Ⅰ 细胞的核型图;(b)环状与链状结构形成示意图;(c)减数分裂中期 Ⅰ 染色体着丝粒与端粒的荧光原位杂交(FISH)图。
再二倍化驱动同源重复基因呈现不对称演化:研究比较了拉萨裸裂尻鱼基因组中基因丢失率,多数基因(79%)保留四个拷贝,少数保留三个(11%)或两个(5.5%)。进一步分析同源基因丢失(指的是在二倍体四联体中,uf染色体或f染色体上缺失的基因),在二倍体四联体中鉴定出360例此类事件。基因组重二倍化程度与基因丢失比例相关,wave1区域基因丢失比例最高,wave2 次之,wave3 最低。并且二倍体染色体中同源基因丢失明显偏向融合染色体,360 例中 71.4%(257 例)发生在融合染色体。
(5)同源基因的表达模式
在保留的四拷贝基因中,基于再二倍化的系统发育证据,选出2,449个二体遗传同源重复基因对(占一个单倍型上所有注释基因的9.8%)。在这些同源基因对的编码序列中,共鉴定出60,169个再二倍化位点,据此可确定来自uf 或f同源基因的转录本。利用11种组织(脑、鳃、肌肉、肝脏、肠道、肾脏、心脏、骨骼、皮肤、膀胱和脾脏)的 RNA-seq数据,比较uf与f同源基因对的相对表达水平:约 20%的同源基因对为uf偏向表达,仅10%表现为f偏向表达。
为探究同源基因表达分化是否在高海拔适应中发挥作用,对拉萨裸裂尻鱼幼鱼进行24小时低温(5°C)胁迫,并对5种组织进行RNA-seq测序。结果显示,鳃组织中的差异表达基因(DEGs)数量多于其他组织。尽管肝脏和心脏的差异表达基因中同源基因对富集,但其他三种组织未出现此富集现象。uf和f基因对低温胁迫的反应一致,即uf基因上调或下调时,其同源的f基因通常也会相应上调或下调。

图5 未融合拷贝(uf)中偏向性基因丢失与转录活性
(a)由等位基因丢失或旁系同源基因丢失导致基因缺失的示意图;(b)融合拷贝(f)的旁系同源基因丢失显著多于未融合拷贝(uf);(c)基于11个组织的RNAseq数据,旁系同源基因更倾向于在未融合拷贝(uf)中高表达;(d)5种组织在对照组(恒温22℃)与冷处理组(低温5℃)间的差异表达基因数量。
研究意义
研究首次明确不平衡染色体融合是脊椎动物同源多倍体再二倍化的关键驱动因子,建立了再二倍化早期演化的完整模型。证实裂腹鱼共享单次祖先 WGD 事件,修正了该类群基因组起源的争议。发现同源多倍体中存在类似异源多倍体的亚基因组偏向性,刷新了多倍体演化的认知。为理解 5 亿年前脊椎动物祖先的再二倍化过程提供了普适性机制参考,也为高海拔生物适应、基因组稳定性维持研究提供新模型。
关于万摩科技
武汉万摩科技有限公司(下称“万摩科技”)是一家以多组学数据分析和研发为技术核心且致力于基因科技应用转化的公司。万摩科技致力于为科研院校、研究机构、测序公司、农业生产及育种公司提供软件研发、数据分析和平台开发服务,专注于基因科技在农业育种方向的应用。
基于二、三代基因测序,万摩科技深耕生物信息技术的开发和应用,每年完成几百个物种的基因组组装。同时,在泛基因组构建、表观遗传解析、群体演化及多组学分析等多个领域建立了极具优势的技术体系。
基于在遗传解析方向的积累,万摩科技深入打造面向种业的应用场景,在种质资源的考察、鉴定、信息库构建、优良性状遗传定位、创制与推广等多个领域建立了极具特色的应用体系。
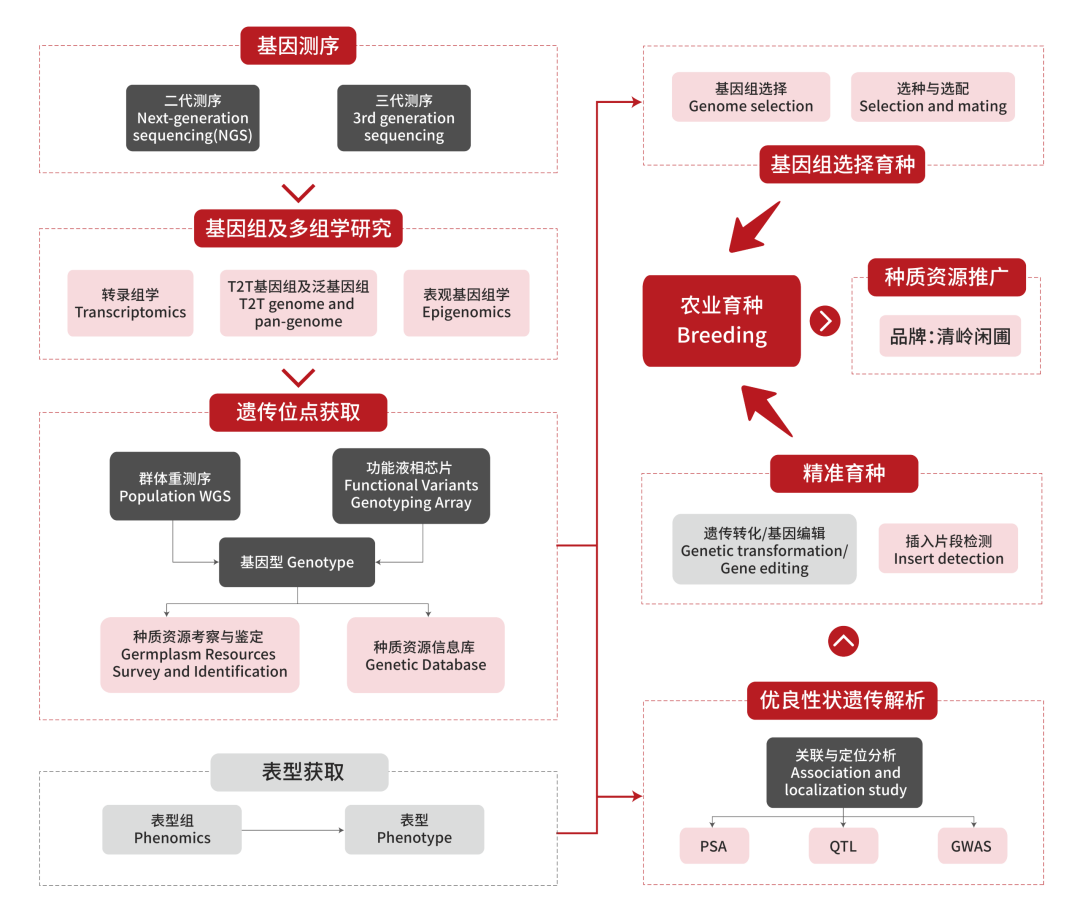
万摩科技亦致力于成为一家数据公司。数据是生命科学表现与解读的承载体,数据的广泛连接与深度挖掘是基因科技应用的必经之路。万摩科技深入探索AI在基因科学领域的应用场景,聚焦于成为这一产业发展过程中的引领者,推动多组学数据多频次多维度的解析,促进组学技术的深入应用。

T:027-63494989
E: service@onemore-tech.com


