

-
首页
-
科研服务
- 基因组
- T2T基因组
- 动植物基因组
- 泛基因组
- 真菌基因组
- 细菌完成图
- 线粒体基因组
- 重测序
- 动植物全基因组重测序
- 性状关联分析
- 转录组
- 二代有参转录组
- 二代无参转录组
- 纳米孔全长转录组
- PB 2+3全长转录组
- 表观组
- Hi-C三维基因组
- 全基因组甲基化
- ATAC-seq
- CUT&Tag
-
分子育种
- 种质资源考察
- 种质资源考察与分类
- 核心种质资源鉴定
- 种质资源指纹图谱
- 种质资源鉴定
- KASP遗传标记
- 亲缘关系鉴定
- 种质资源信息库和性状解析
- 种质资源遗传库
- 性状关联分析
- 种质资源创新创制与推广
- 遗传转化与基因编辑检测
- 液相芯片
- 基因组选择育种
- 种质资源应用推广
-
建库测序
- 短读长建库
- DNA文库
- RNA文库
- 表观组文库
- 送样建议
- 短读长测序
- Novaseq(X Plus,6000)
- DNBSEQ(T7,T7+)
- FAQ-短读长建库测序
- 长读长建库测序
- DNA建库测序
- RNA建库测序
- 表观组建库测序
- 送样建议
- FAQ-长读长建库测序
-
资源中心
- OMSearch
- 技术分享
- 送样建议
- 引物设计
-
关于万摩
- 公司简介
- 新闻资讯
- 项目成果
- 加入万摩
-
首页
-
科研服务
- 基因组
- T2T基因组
- 动植物基因组
- 泛基因组
- 真菌基因组
- 细菌完成图
- 线粒体基因组
- 重测序
- 动植物全基因组重测序
- 性状关联分析
- 转录组
- 二代有参转录组
- 二代无参转录组
- 纳米孔全长转录组
- PB 2+3全长转录组
- 表观组
- Hi-C三维基因组
- 全基因组甲基化
- ATAC-seq
- CUT&Tag
-
分子育种
- 种质资源考察
- 种质资源考察与分类
- 核心种质资源鉴定
- 种质资源指纹图谱
- 种质资源鉴定
- KASP遗传标记
- 亲缘关系鉴定
- 种质资源信息库和性状解析
- 种质资源遗传库
- 性状关联分析
- 种质资源创新创制与推广
- 遗传转化与基因编辑检测
- 液相芯片
- 基因组选择育种
- 种质资源应用推广
-
建库测序
- 短读长建库
- DNA文库
- RNA文库
- 表观组文库
- 送样建议
- 短读长测序
- Novaseq(X Plus,6000)
- DNBSEQ(T7,T7+)
- FAQ-短读长建库测序
- 长读长建库测序
- DNA建库测序
- RNA建库测序
- 表观组建库测序
- 送样建议
- FAQ-长读长建库测序
-
资源中心
- OMSearch
- 技术分享
- 送样建议
- 引物设计
-
关于万摩
- 公司简介
- 新闻资讯
- 项目成果
- 加入万摩
-
测序方案

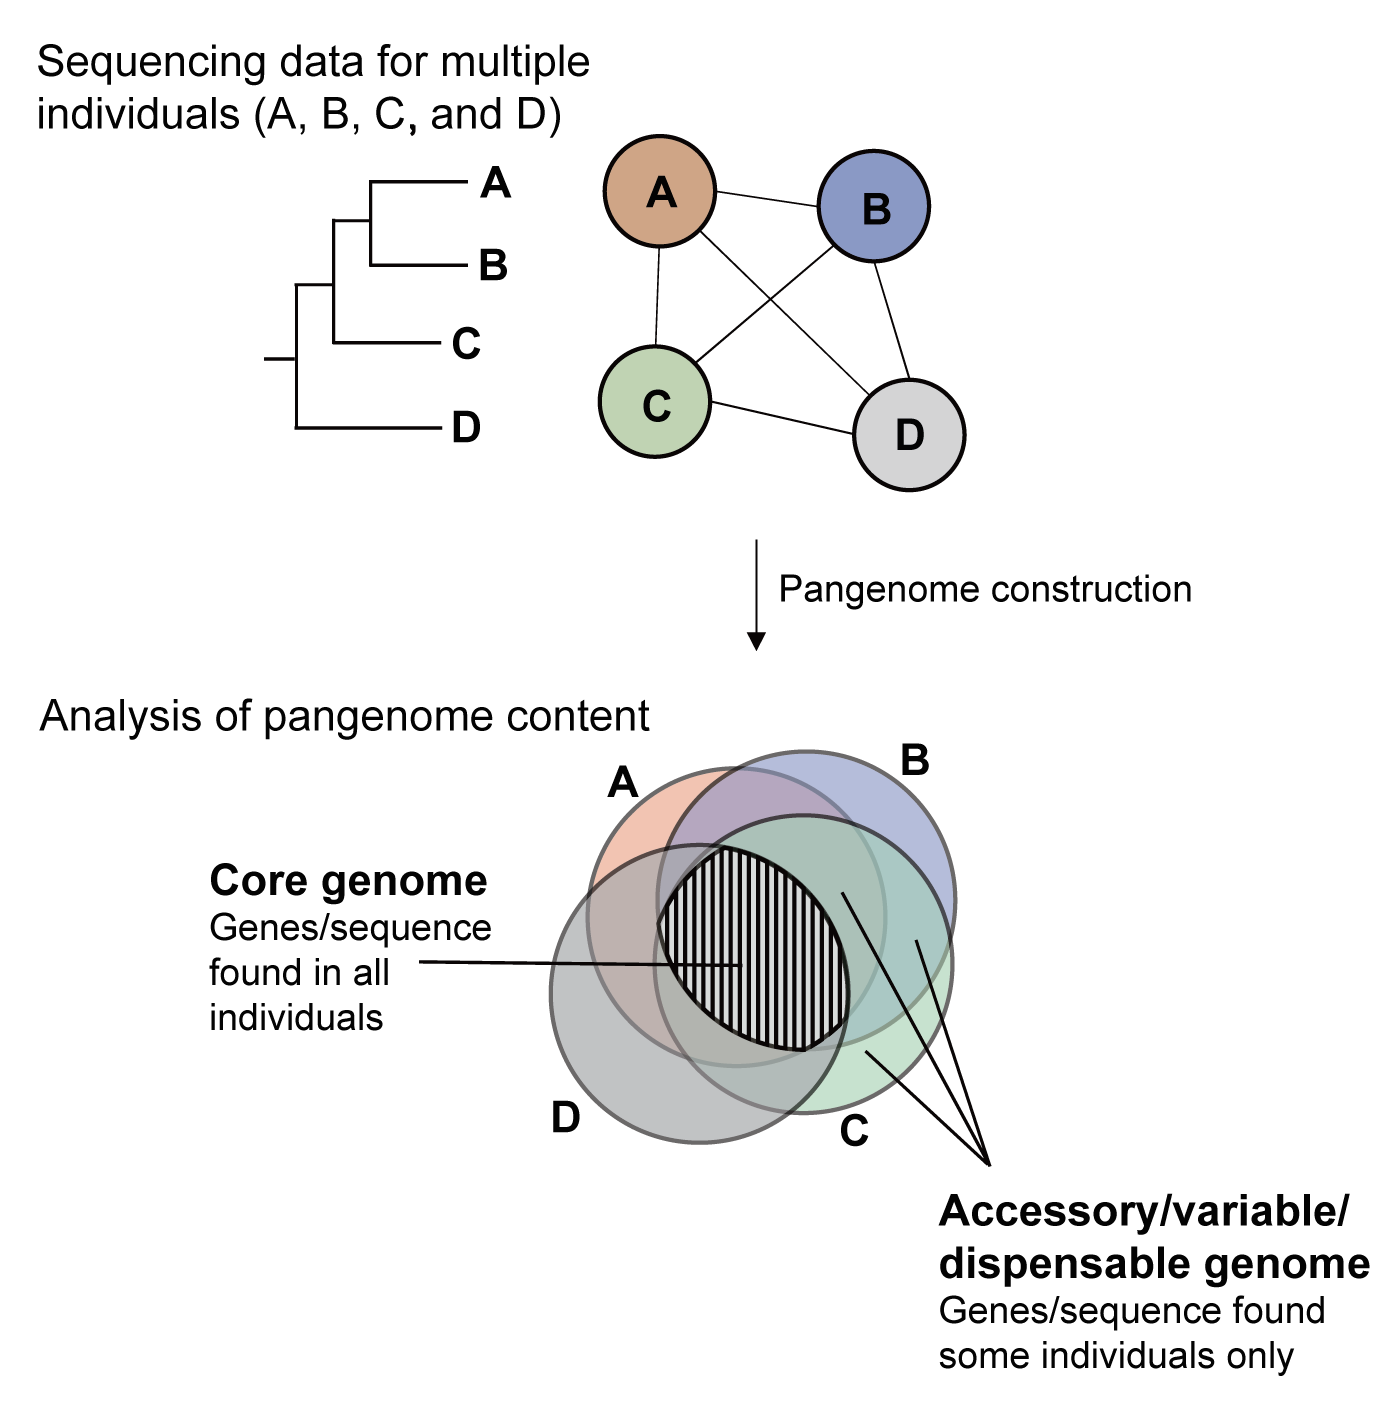
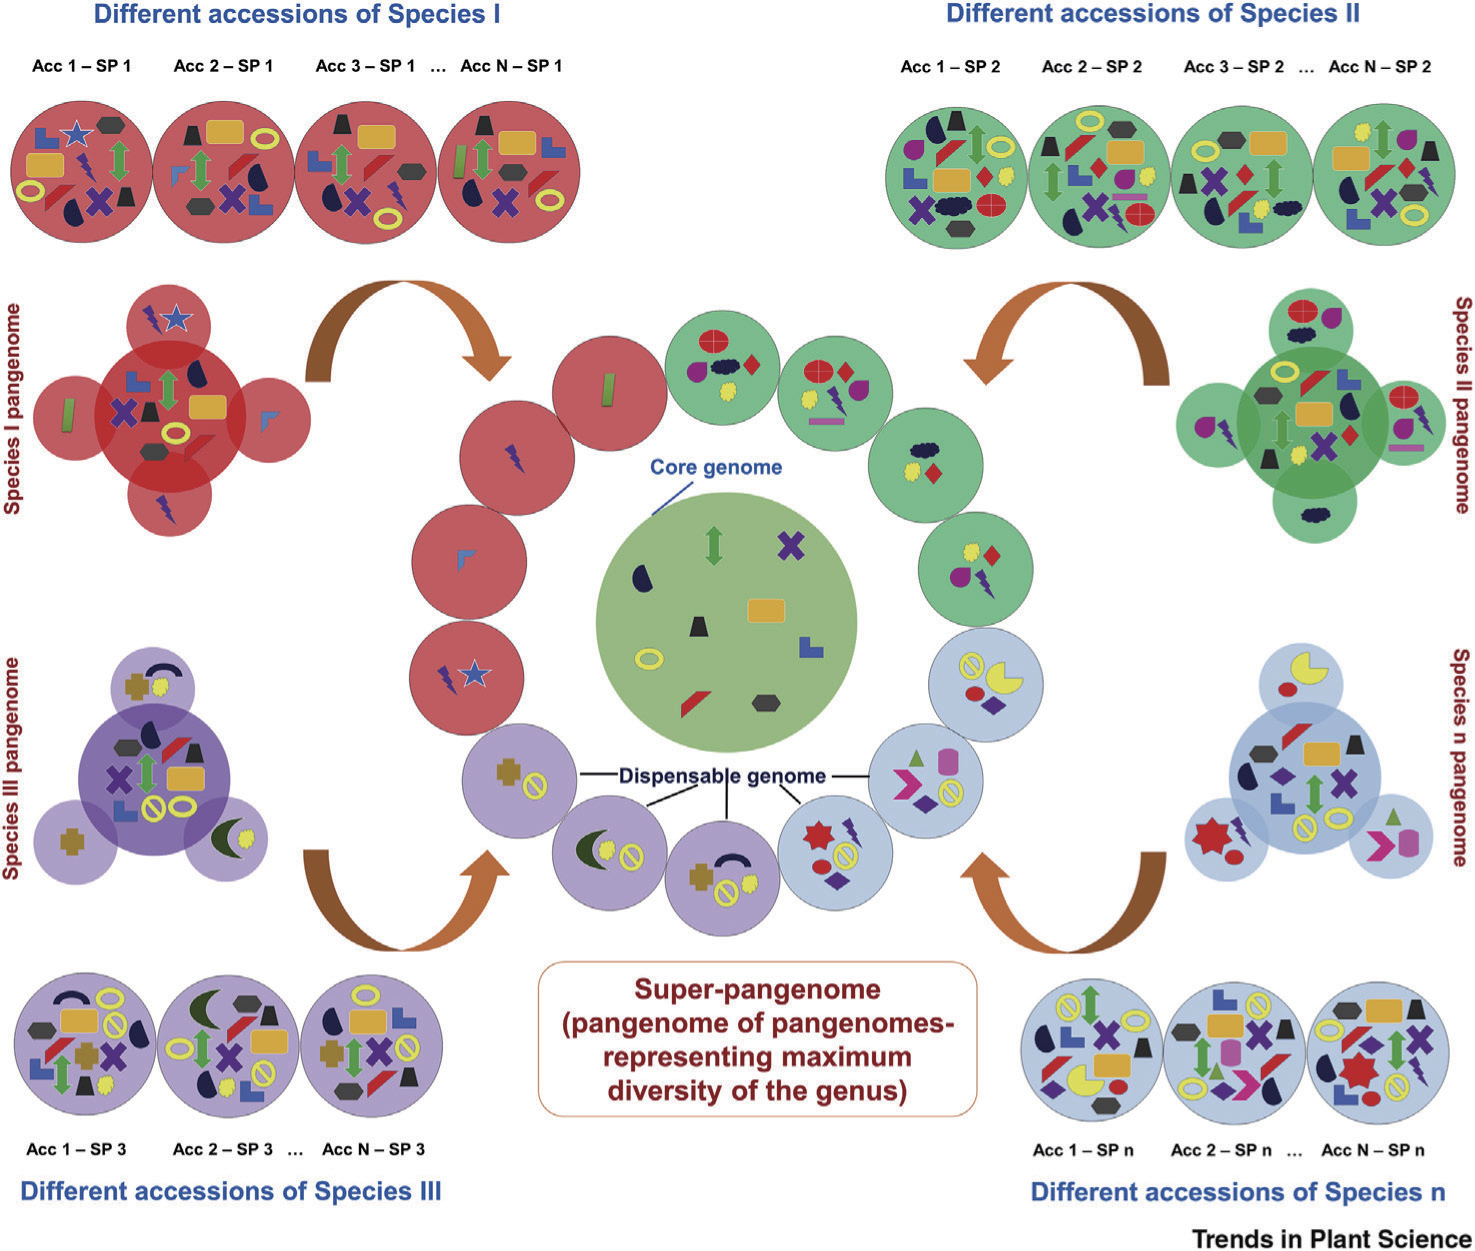
泛基因组是指物种或特定群体内全部基因或基因组序列的总和。泛基因组通过完整捕获和呈现群体内全部的基因或基因组序列,代替单一参考基因组应用于功能基因组学研究,可以突破单一参考基因组的局限性。2005年,Tettelin等人提出了微生物泛基因组概念;2009年,Li等人首次提出了人类泛基因组的概念;2013年,泛基因组测序应用于动植物研究领域;2020年,Khan等人提出super pan-genome的概念。
泛基因组在动植物功能基因组学研究中有广泛的应用,以泛基因组为基础,结合最新的基因组学技术可以高效、精准鉴定种质资源中的遗传变异。
图1.泛基因组的构建
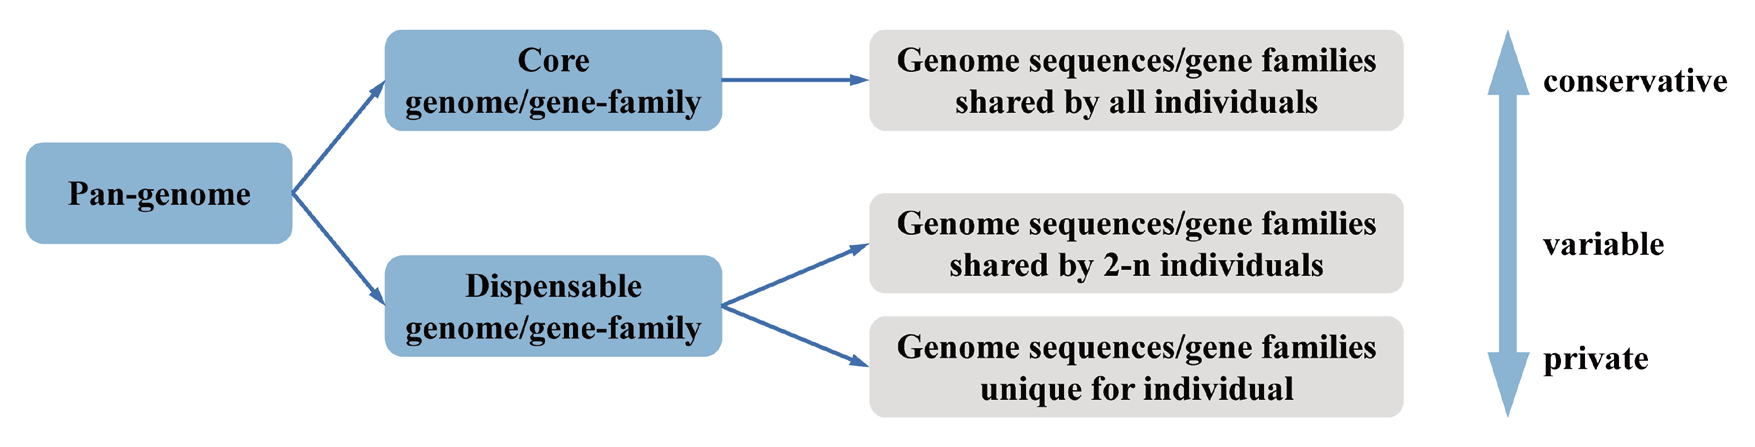
图2.泛基因组的组成
研究选材
◎pan-genome
·不同亚种的材料 —— 研究物种的起源及演化
·野生种和栽培种等不同特性的种质资源 —— 发掘重要性状相关的遗传基础、辅助育种
·不同生态地理类型的种质资源 —— 物种的适应性进化、分子生态学
◎super pan-genome
·同属内不同种的材料
产品优势
从研究目的和材料出发,提供科学的方案建议,从取材、建库测序及分析方案各个层次进行缜密的设计,保障研究成果的达成 。
产品定义
图3.材料选择与泛基因组构建
根据研究对象和重点的不同,泛基因组有两种定义。
第一种是功能性的定义,以功能基因为核心研究对象。根据此定义,泛基因组是指群体内所有功能基因的总和。这个定义以功能基因为泛基因组的基本元素,通过泛基因组研究群体内功能基因的分布和结构变异,捕获和呈现群体内全部的功能基因。这个定义还可以进一步从基因拓展至基因家族,以基因家族为元素进行泛基因组构建和分析。
参考基因组是现代功能基因组学的核心框架,以此为基础的现代基因组学技术对动植物遗传变异发掘、功能基因克隆等研究起了巨大的推动作用。然而,在基因组分析中使用单一参考基因组所产生的偏差不容忽视。多项研究表明,参考基因组的选择对基因表达量化和全基因组关联分析的结果有重大影响。在一些个体中,与重要性状相关的辅助基因组区域可能在参考序列中完全缺失,因此可能被无意中排除在关联研究之外。因此,在分析中合并泛基因组序列和替代等位基因对提高性状关联分析的准确性非常重要。人类基因组中丰富的非编码疾病相关变异,以及泛基因组中非编码可变区域的普遍存在,也表明类似因素对人类性状关联研究非常重要。
测序需求
所有个体均采用三代测序进行基因组的构建,同时选择部分代表性个体或者所有个体进行染色体水平的基因组构建。


表1 参考基因组与测序个体数
表2 单样本组装方案
测序方案
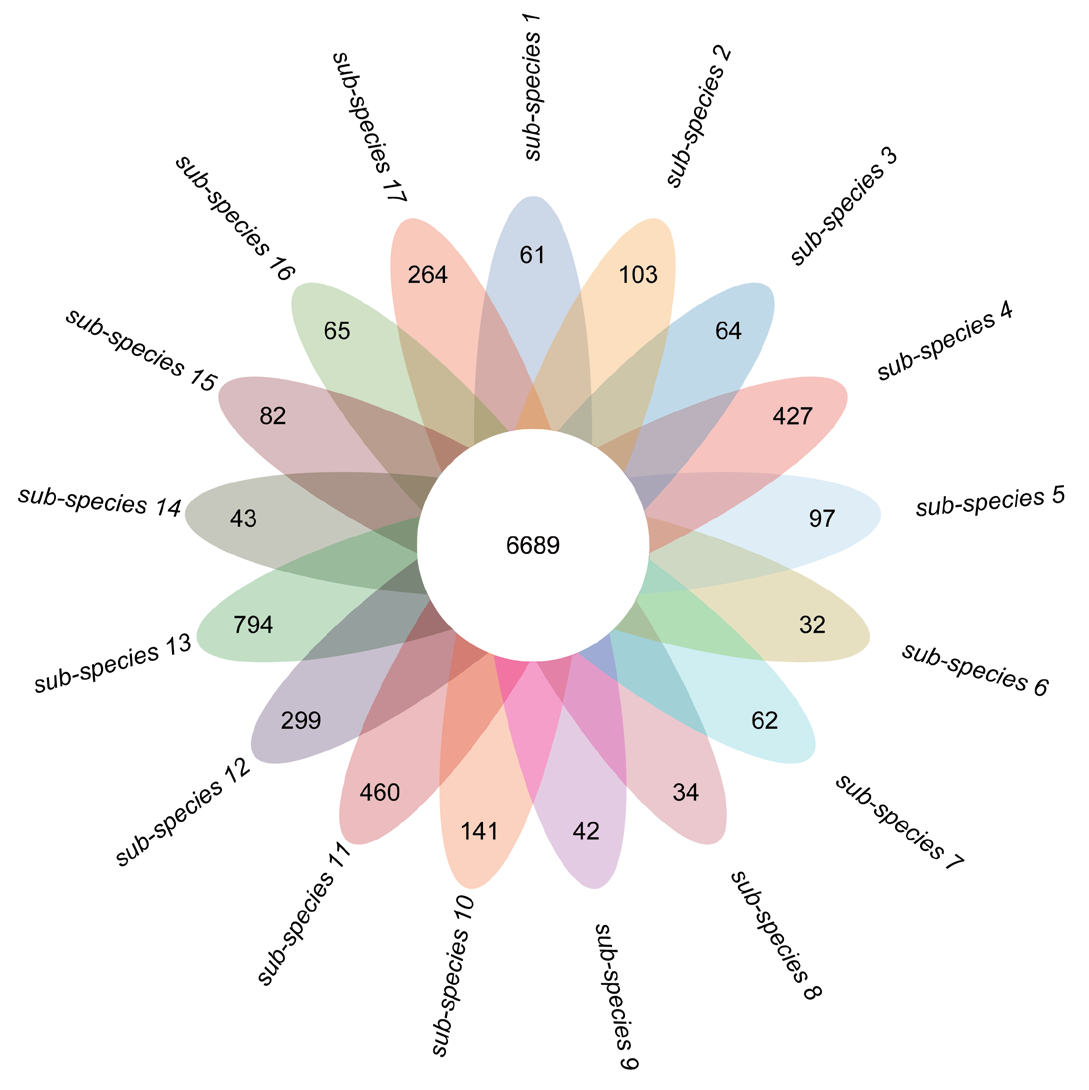
图4.基于基因集的泛基因组构建
第二种是结构性的定义,是通过对群体内的基因组序列进行比较分析,收集和呈现群体内全部基因组序列,并以序列变异作为泛基因组分析的基本元素。
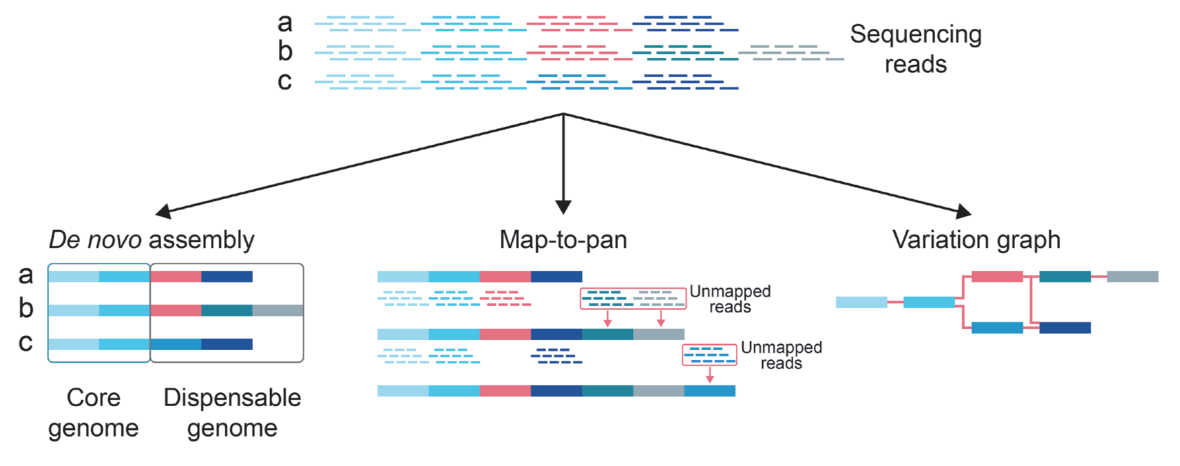
图5.基于基因组的泛基因组构建
基于以上方法,先对每一个个体独立进行三代基因组的组装和注释,进而从两个层面构建泛基因组。
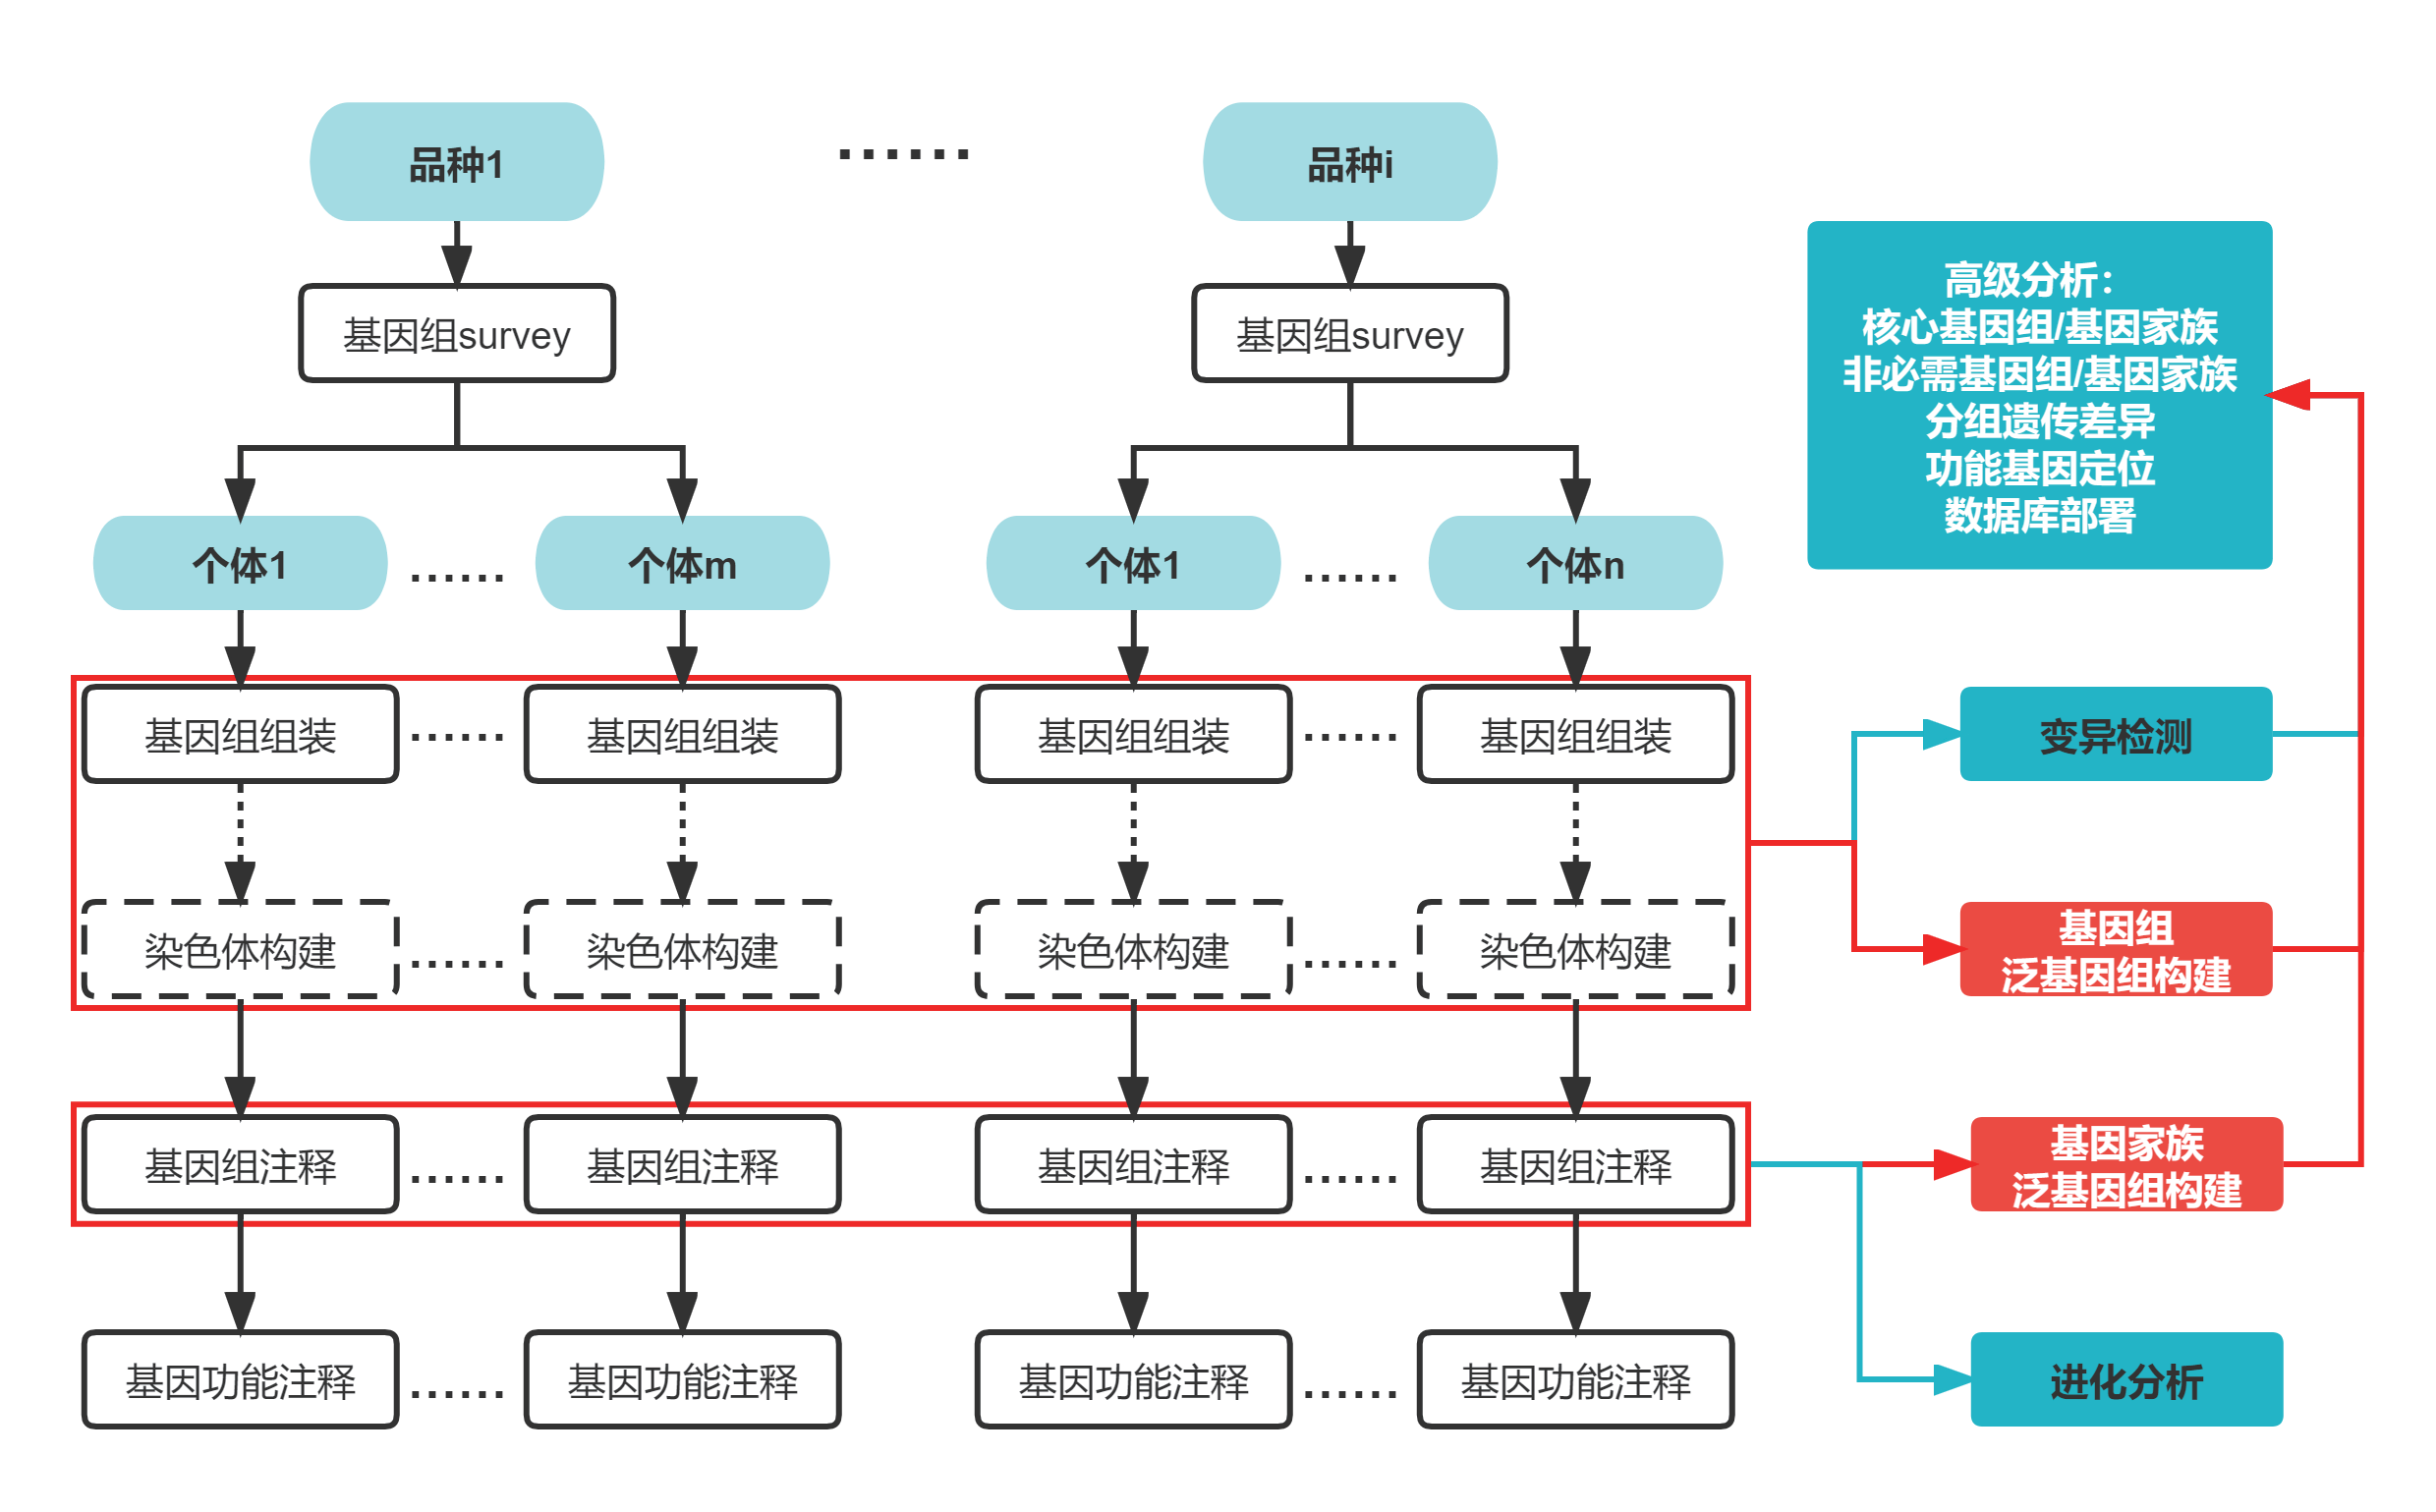
图6.泛基因组分析内容
表2 单样本组装方案

-
图7.个体间系统发育关系

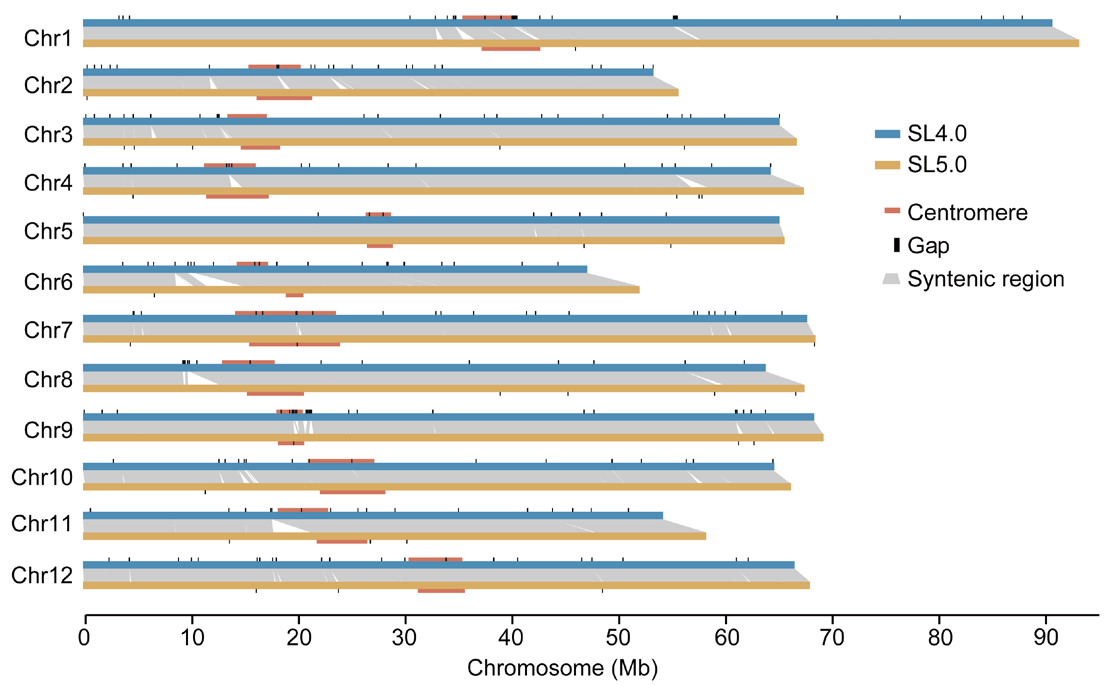
图8.多基因组比对及结构变异鉴定
泛基因组构建
基于基因家族或者基因组序列,鉴定核心基因组/基因家族,以及非必需基因组/基因家族。并基于该部分结果,解析群体的遗传多样性。

图9.泛基因组构建
功能基因定位
基因组的结构变异可以导致物种个体间基因结构、表达特性、基因剂量等发生实质性地变化,并会对植物农艺性状与动物生产性状产生非常深刻的影响。
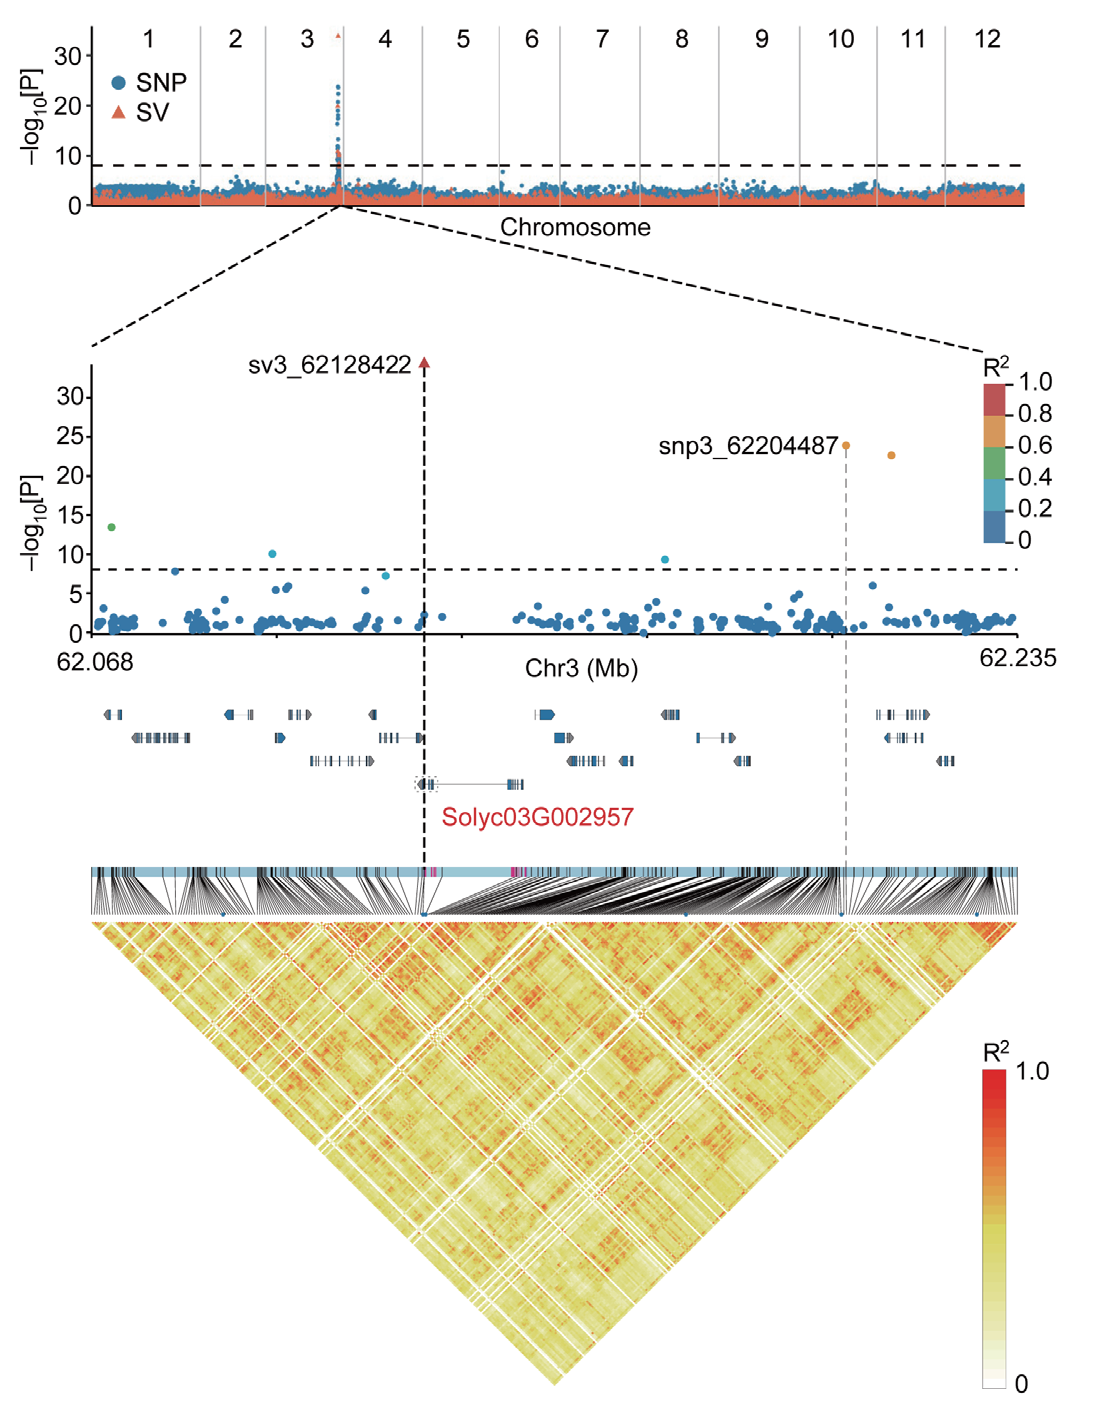
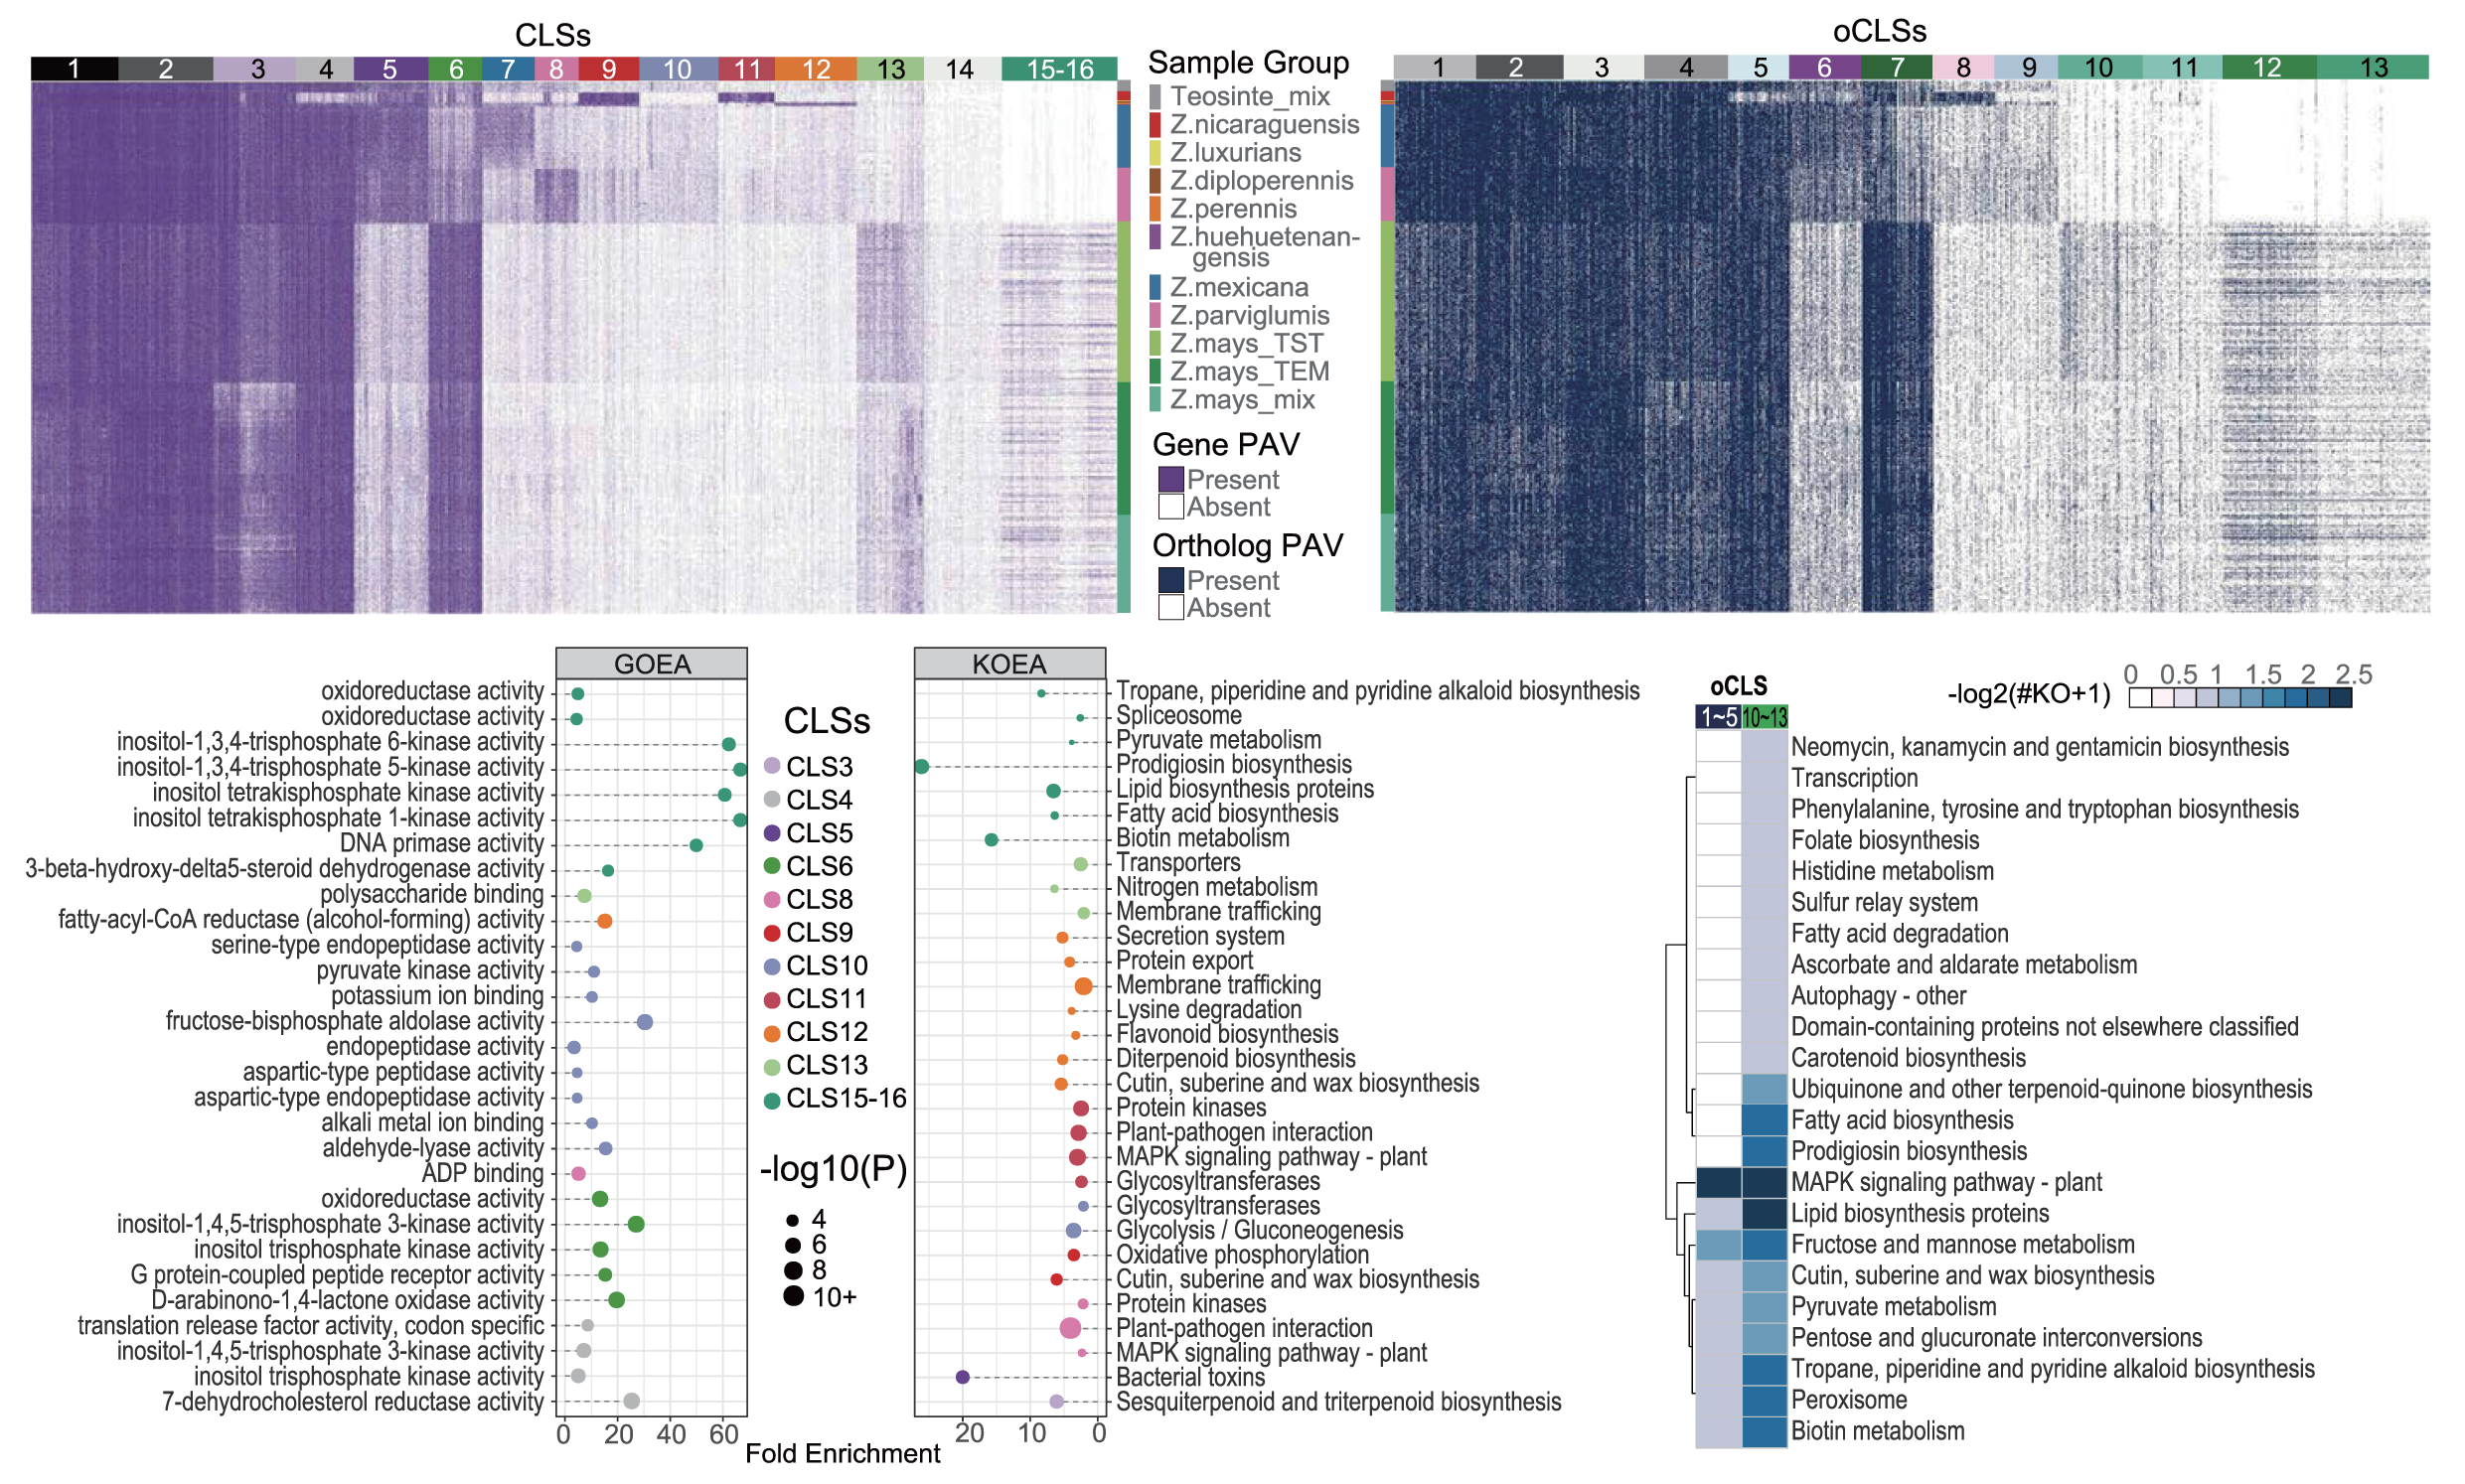
图10.PAV鉴定及功能富集
图11.基于SNP和SV的全基因组关联分析
个体间系统发育关系
基因组比对与结构变异
泛基因组设计之初,取样个体之间往往能通过特定的属性或者特征进行区分,如地理种群,野生与驯化种群,不同亚种等等。基于每个个体的基因组组装和注释,能利用全部的蛋白编码基因更加准确的构建系统发育关系,从而验证或者从头构建其进化关系,解析进化历史。
通过全基因组的组装,得到完整的基因组序列,可以进一步在基因组序列水平进行结构变异及相关特征的鉴定。
PAV分析
大量的研究表明,包括拷贝数变异(CNV,copy number variation)、获得与缺失变异(PAV,presence/absence variation)在内的结构变异在动植物品种间普遍存在。利用构建的泛基因组序列,可以非常方便与准确的得到个体间的PAV。
-
Q2 核心基因组与非必需基因组如何划分?其各自代表的生物学意义是什么?
核心基因组的鉴定在一定程度上受到基因组de novo组装的影响(随着个体数的增加,这个影响会逐渐变的严重),核心基因集的鉴定既受组装的影响,也受基因结构注释的影响,因此在实际工作中,往往不直接进行简单的核心和非必需基因组的划分。更多的时候,会大致进行如下划分:在所有个体基因组中均存在的为core,在几乎所有个体中发现的为soft-core,在部分个体中发现的为shell,以及在只有几个个体中发现的为cloud。具体的分类比例与样品数量往往根据物种分类和数据的实际情况进行确定。非必需基因组在细菌、真菌和植物泛基因组中占很大比例,但哺乳动物泛基因组主要由核心基因组控制(据报道,人类基因中高达96.9%为核心基因)。
核心基因组普遍被看家功能所代表,包括生物体生命所必需的基因。非必需基因组在真核生物中大多可以追溯到局部和全基因组复制,以及新基因的诞生。但非必需基因组的整体适应性、中性甚至有害性的问题仍然悬而未决。
在大型真核生物基因组中,由于基因之间的同源关系、功能冗余的存在、导致整个单倍型遗传的广泛连锁不平衡,以及非必需基因的功能不相关性,使得这个问题相比在原核生物中更为复杂。一些非必需基因可以被认为是适应性的,与重要性状相关,包括生物和非生物胁迫反应和植物开花时间;而有些非必需基因似乎正在较小的进化约束力下进化,并且总体表达水平较低。
总体而言,基因组或基因区域是否被认为是适应性的、有害的或中性的,需要综合考虑进化压力与时间、环境以及生物学功能重要性。
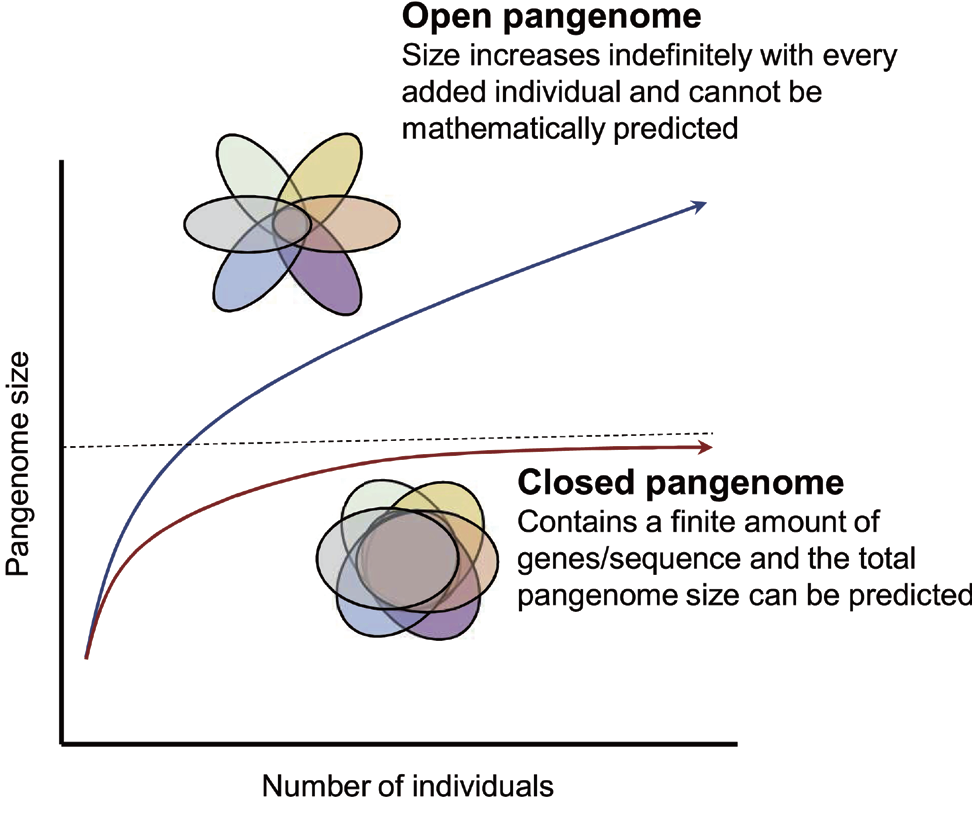
图12.泛基因组的类型
Q1 泛基因组大小是否一定会随着个体的增多而达到稳定?
由于物种受到生存环境与生态位差异、有效群体规模、多态性水平差异等因素的影响,泛基因组呈现开放型和闭合型两种模式。当泛基因组是闭合型时,对足够数量的个体进行测序就可以捕获几乎整个基因/基因组遗传序列,并很快达到平台期,从而可以预测泛基因组的理论大小。相比之下,在开放型泛基因组中,每个新个体的加入都会增加泛基因组的内容,使得很难预测最终的泛基因组大小。甚至在某些情况下,泛基因组在基因组序列方面是开放的,但在基因家族和基因方面是闭合的。迄今为止,大多数的泛基因组都建立在物种水平上(在某些情况下,特别是在细菌中,物种可能很难定义),但为了获取最大的多样性,泛基因组分析已扩展到更高的分类学类群,如super pan-genome。同时,核心/泛基因组的比值甚至被用于定义新的亚种或者物种。
-
- Tettelin H, Masignani V, Cieslewicz MJ, et al. Genome analysis of multiple pathogenic isolates of Streptococcus agalactiae: implications for the microbial "pan-genome" [published correction appears in Proc Natl Acad Sci U S A. 2005 Nov 8;102(45):16530]. Proc Natl Acad Sci U S A. 2005;102(39):13950-13955. doi:10.1073/pnas.0506758102
- Li R, Li Y, Zheng H, et al. Building the sequence map of the human pan-genome. Nat Biotechnol. 2010;28(1):57-63. doi:10.1038/nbt.1596.
- Li YH, Zhou G, Ma J, et al. De novo assembly of soybean wild relatives for pan-genome analysis of diversity and agronomic traits. Nat Biotechnol. 2014;32(10):1045-1052. doi:10.1038/nbt.2979
- Khan AW, Garg V, Roorkiwal M, Golicz AA, Edwards D, Varshney RK. Super-Pangenome by Integrating the Wild Side of a Species for Accelerated Crop Improvement. Trends Plant Sci. 2020;25(2):148-158. doi:10.1016/j.tplants.2019.10.012
- Golicz AA, Batley J, Edwards D. Towards plant pangenomics. Plant Biotechnol J. 2016;14(4):1099-1105. doi:10.1111/pbi.12499
- Li H, Feng X, Chu C. The design and construction of reference pangenome graphs with minigraph. Genome Biol. 2020;21(1):265. Published 2020 Oct 16. doi:10.1186/s13059-020-02168-z
- Golicz AA, Bayer PE, Bhalla PL, Batley J, Edwards D. Pangenomics Comes of Age: From Bacteria to Plant and Animal Applications. Trends Genet. 2020;36(2):132-145. doi:10.1016/j.tig.2019.11.006
- Tao Y, Zhao X, Mace E, Henry R, Jordan D. Exploring and Exploiting Pan-genomics for Crop Improvement. Mol Plant. 2019;12(2):156-169. doi:10.1016/j.molp.2018.12.016
- ZHAO Jun-liang,ZHANG Shao-hong and LIU Bin. Research Progress on Pangenome and Its Application in Plant Functional Genetics. Journal of Plant Genetic Resources. 2021, 22(1): 7-15 https://doi.org/10.13430/j.cnki.jpgr.20200528001
- Song JM, Guan Z, Hu J, et al. Eight high-quality genomes reveal pan-genome architecture and ecotype differentiation of Brassica napus. Nat Plants. 2020;6(1):34-45. doi:10.1038/s41477-019-0577-7
- Liu Y, Du H, Li P, et al. Pan-Genome of Wild and Cultivated Soybeans. Cell. 2020;182(1):162-176.e13. doi:10.1016/j.cell.2020.05.023
- Zhou Y, Zhang Z, Bao Z, et al. Graph pangenome captures missing heritability and empowers tomato breeding. Nature. 2022;606(7914):527-534. doi:10.1038/s41586-022-04808-9
- Shang L, Li X, He H, et al. A super pan-genomic landscape of rice. Cell Res. 2022;32(10):878-896. doi:10.1038/s41422-022-00685-z
- Gui S, Wei W, Jiang C, et al. A pan-Zea genome map for enhancing maize improvement. Genome Biol. 2022;23(1):178. Published 2022 Aug 23. doi:10.1186/s13059-022-02742-7
- Liao WW, Asri M, Ebler J, et al. A draft human pangenome reference. Nature. 2023;617(7960):312-324. doi:10.1038/s41586-023-05896-x
- Liu X, Liu W, Lenstra JA, et al. Evolutionary origin of genomic structural variations in domestic yaks. Nat Commun. 2023;14(1):5617. Published 2023 Sep 19. doi:10.1038/s41467-023-41220-x
- Liu Z, Wang N, Su Y, et al. Grapevine pangenome facilitates trait genetics and genomic breeding. Nat Genet. Published online November 4, 2024. doi:10.1038/s41588-024-01967-5
- Lynch RC, Padgitt-Cobb LK, Garfinkel AR, et al. Domesticated cannabinoid synthases amid a wild mosaic cannabis pangenome. Nature. Published online May 28, 2025. doi:10.1038/s41586-025-09065-0


